Potencial de Repouso da Membrana: A Base Elétrica do P-DTR
Antes de qualquer potencial de ação, existe uma voltagem estável entre o interior e o exterior do neurónio. Compreender essa base elétrica ajuda a entender por que razão o P-DTR consegue mudar tão rapidamente o output motor e a dor.
Publicado em 18 de março de 2026 por Tiago Pedro
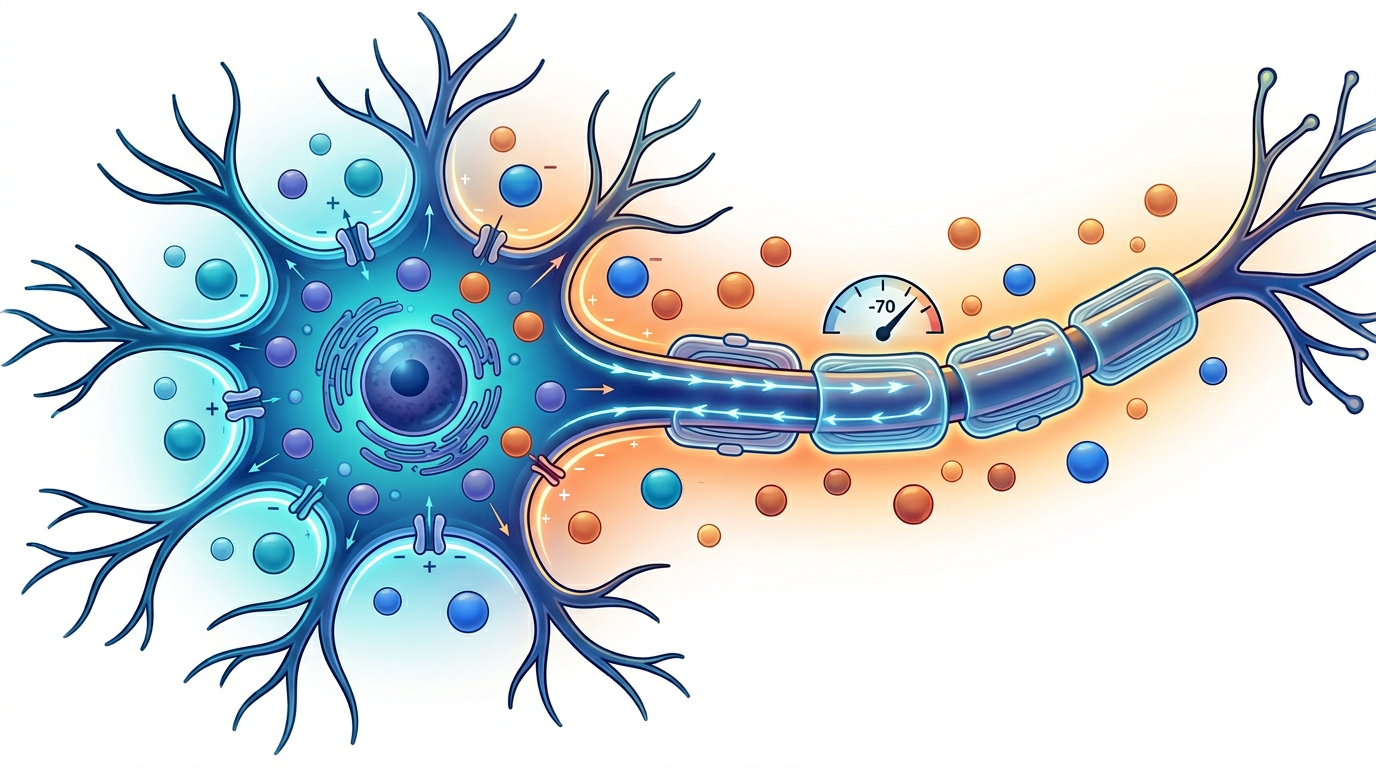
Os neurónios comunicam através de pequenos sinais elétricos que percorrem a sua membrana. Estes sinais só são possíveis porque cada neurónio mantém uma diferença de voltagem estável entre o interior e o exterior da célula — o chamado potencial de repouso da membrana, normalmente entre −60 e −70 mV (negativo no interior).
1. O que cria esta voltagem?
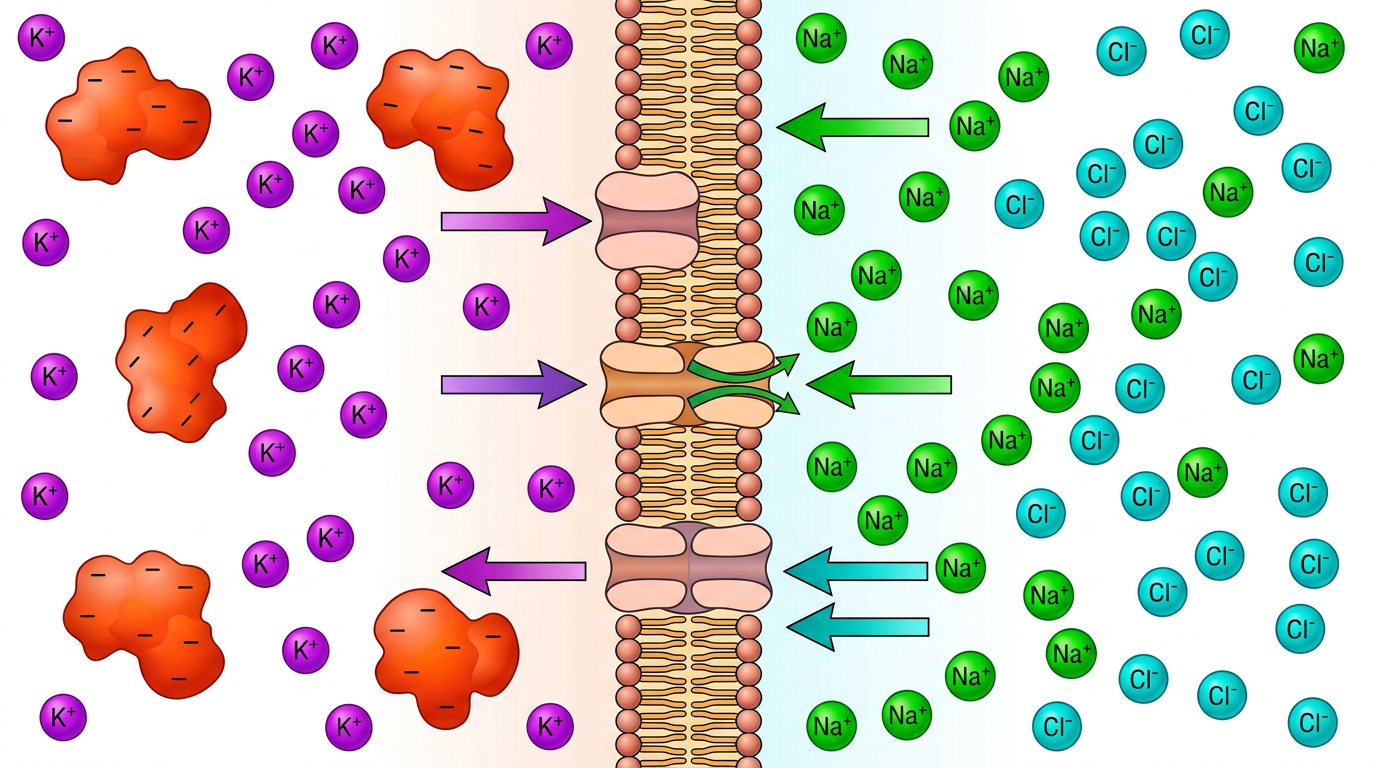
A membrana neuronal separa dois fluidos com composições iónicas diferentes. No interior da célula há muito potássio (K⁺) e proteínas com carga negativa; no exterior há muito mais sódio (Na⁺) e cloro (Cl⁻). Esta distribuição desigual de iões cria uma pequena separação de carga através da membrana, que medimos como uma diferença de potencial elétrico.
Duas forças básicas movem os iões através da membrana:
- Difusão: os iões movem-se de zonas de alta concentração para zonas de baixa concentração.
- Força elétrica: cargas opostas atraem-se, cargas iguais repelem-se.
Quando um canal iónico abre, o ião move-se de acordo com a combinação destas duas forças — o seu gradiente eletroquímico — até atingir equilíbrio.
2. Permeabilidade seletiva: por que razão o K⁺ domina em repouso
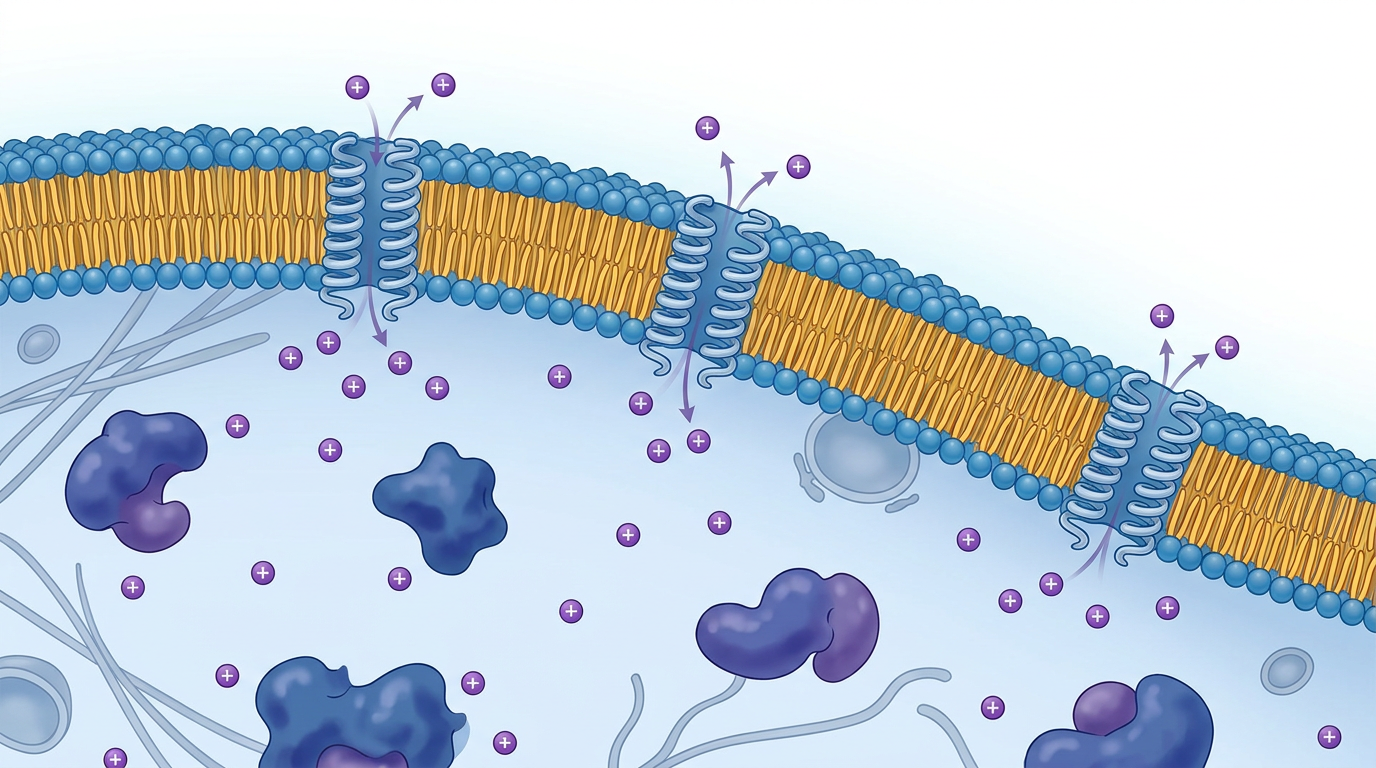
A membrana não é igualmente permeável a todos os iões. Em repouso, é muito mais “permeável” ao K⁺ do que ao Na⁺, graças aos canais de fuga de potássio, que estão abertos a maior parte do tempo. O K⁺ tende a difundir-se para fora da célula, deixando atrás proteínas com carga negativa e tornando o interior mais negativo.
À medida que o interior se torna mais negativo, começa a atrair o K⁺ de volta, opondo-se a uma perda adicional de carga positiva. Quando a difusão de K⁺ para fora e a atração elétrica para dentro se equilibram, o K⁺ atinge o seu potencial de equilíbrio, próximo dos −90 mV em muitas células. Como o K⁺ domina a permeabilidade da membrana em repouso, o potencial de repouso situa-se próximo deste valor, ainda que ligeiramente menos negativo devido a pequenas fugas de Na⁺ e Cl⁻.
3. As ideias de Nernst e GHK (sem a matemática)
Os fisiologistas descrevem estas relações através de duas equações principais:
- A equação de Nernst calcula o potencial de equilíbrio para um único ião, com base na proporção da sua concentração dentro/fora da célula. Se a membrana fosse permeável apenas ao K⁺, o potencial de membrana seria igual ao potencial de Nernst para o K⁺.
- A equação de Goldman-Hodgkin-Katz (GHK) combina vários iões, ponderando cada um pela sua permeabilidade na membrana. Isto explica por que razão o potencial de repouso real é definido sobretudo pelo K⁺, mas ligeiramente deslocado pelo Na⁺ e pelo Cl⁻.
Para quem estuda P-DTR, a ideia central é simples: cada ião tem a sua “voltagem preferida” (potencial de Nernst), e o potencial de repouso da membrana é uma média ponderada dessas preferências, determinada por quais canais estão abertos.
4. A bomba sódio-potássio: manter os gradientes
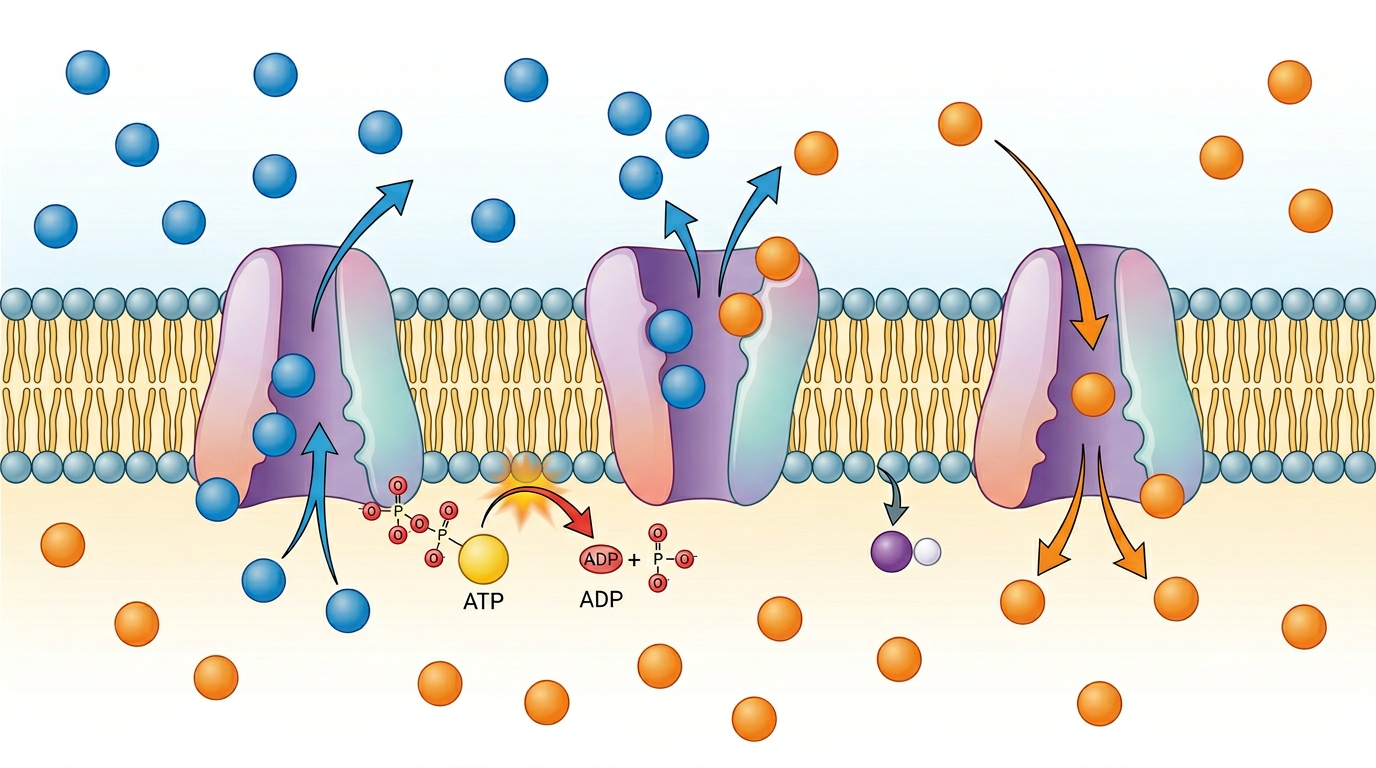
Como os iões estão continuamente a vazar, os gradientes desapareceriam com o tempo se nada os restaurasse. A bomba sódio-potássio (Na⁺/K⁺-ATPase) evita isso, usando ATP para expulsar 3 Na⁺ da célula e trazer 2 K⁺ para dentro, contra os respetivos gradientes de concentração. Esta bomba mantém o K⁺ intracelular elevado e o Na⁺ intracelular baixo, algo essencial tanto para o potencial de repouso como para a geração de potenciais de ação.
Quando o ATP é escasso (por exemplo, em fadiga, stress metabólico ou isquemia), estes gradientes começam a colapsar. O potencial de repouso desvia-se, e os neurónios tornam-se menos excitáveis ou, pelo contrário, anormalmente excitáveis. Esta alteração de excitabilidade é um mecanismo de fundo importante em muitos problemas funcionais observados na prática clínica.
5. Por que razão isto importa para o P-DTR
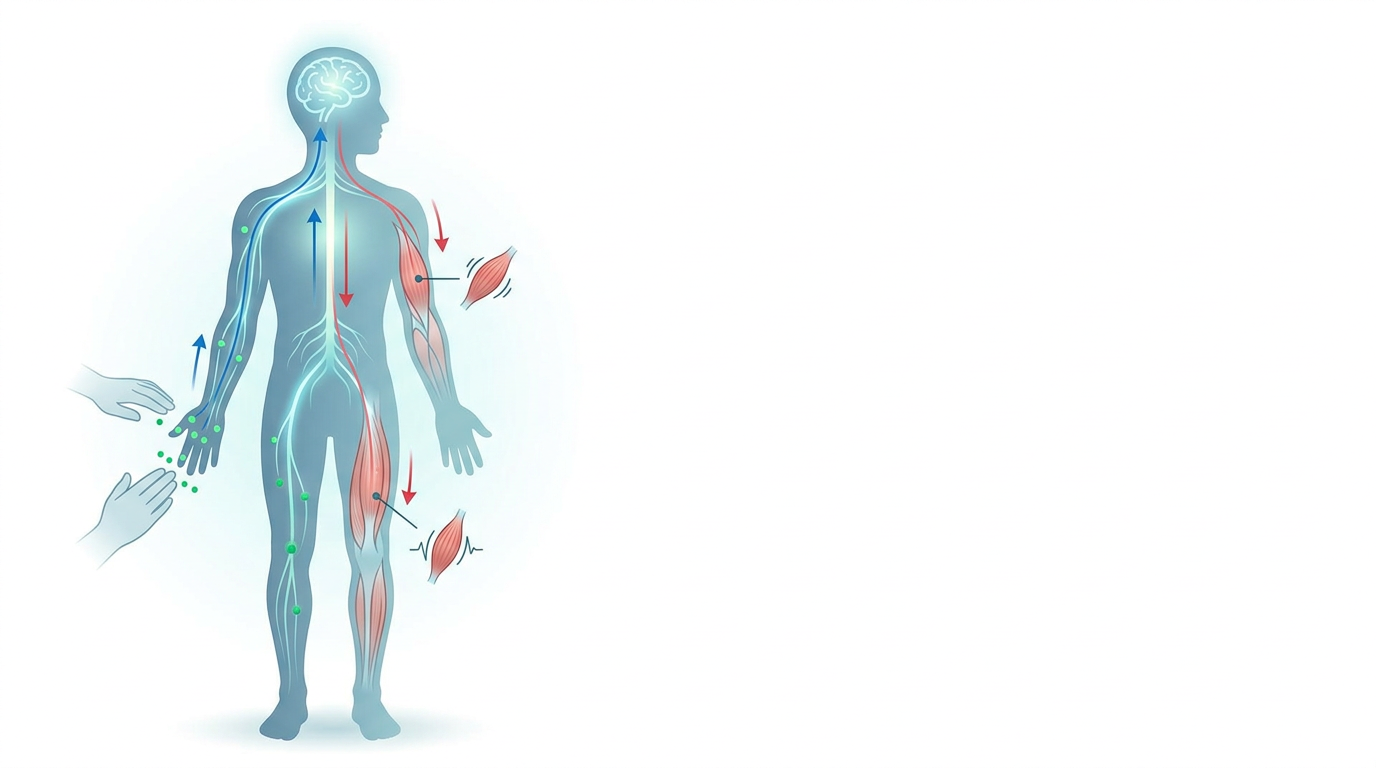
O P-DTR assenta na ideia de que o sistema nervoso avalia constantemente o input sensorial e ajusta o output motor em resposta. Para cada recetor e neurónio envolvido nestes circuitos, o potencial de repouso da membrana determina o quão fácil é atingir o limiar e disparar um potencial de ação.
Do ponto de vista do P-DTR:
- Qualquer fator que altere os gradientes iónicos, a permeabilidade da membrana ou a disponibilidade de ATP vai alterar a excitabilidade neuronal.
- A disfunção de recetores periféricos, o input nocicetivo crónico, o desequilíbrio autónomo e o stress metabólico podem todos deslocar os potenciais de repouso e alterar a forma como o SNC interpreta e responde à informação sensorial.
- As intervenções de P-DTR podem ser vistas como formas de normalizar um input aferente defeituoso, ajudando as redes neuronais a operar mais próximas do seu estado ótimo de repouso e disparo.
Quando o aluno compreende o potencial de repouso da membrana, ganha uma imagem mais clara de por que razão alterar o input sensorial pode mudar de forma tão poderosa o output motor e o comportamento da dor. Esta “base elétrica” é o fundamento de todos os conceitos de nível mais avançado que irá encontrar ao longo dos cursos de P-DTR.