Sinais Provenientes dos Nocicetores
Os sinais dos nocicetores chegam aos neurónios do corno dorsal da espinal medula seguindo uma organização anatómica muito precisa. Compreender essa organização ajuda a explicar fenómenos como a dor referida.
Publicado em 05 de março de 2021 por Miguel Vieira
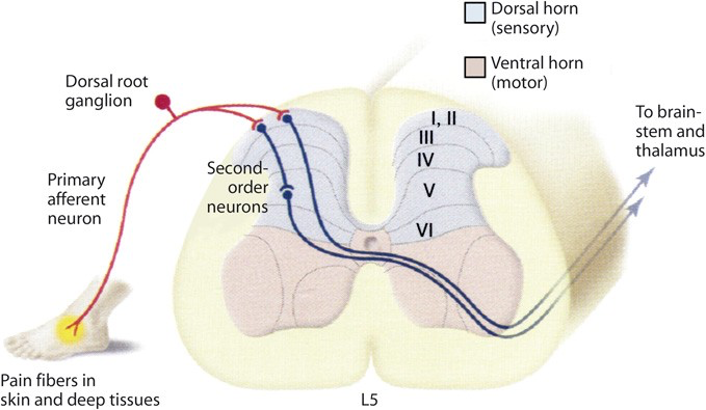
Os sinais gerados pelos nocicetores são conduzidos até aos neurónios do corno dorsal da espinal medula. A perceção de estímulos nocivos tem origem nos ramos axonais periféricos de neurónios sensitivos nocicetivos, cujos corpos celulares se situam nos gânglios das raízes dorsais ou no gânglio trigeminal. Os ramos centrais destes neurónios terminam na espinal medula segundo uma organização muito precisa: a maioria termina no corno dorsal, e os neurónios aferentes primários responsáveis por diferentes modalidades sensoriais terminam em lâminas distintas.
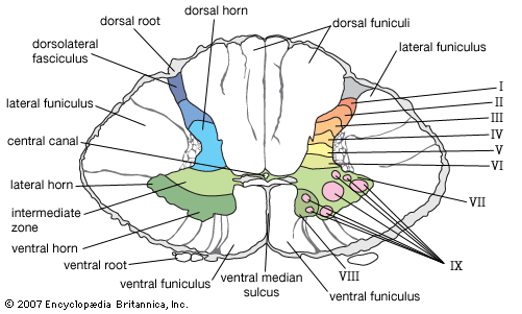
Existe, assim, uma relação estreita entre a organização anatómica dos neurónios do corno dorsal, as suas propriedades de resposta e a sua função no processamento sensorial. Muitos neurónios da lâmina mais superficial do corno dorsal — a lâmina I, ou camada marginal — respondem a estímulos nocivos transmitidos por fibras A-delta e C. Como respondem seletivamente a esse tipo de estimulação, são conhecidos como neurónios específicos da nocicepção, e projetam-se para centros cerebrais superiores, nomeadamente o tálamo. Uma segunda classe de neurónios da lâmina I recebe informação de fibras C ativadas seletivamente pelo frio intenso. Outras classes de neurónios desta lâmina respondem de forma graduada tanto a estímulos mecânicos inócuos como nocivos, sendo por isso designados neurónios de amplo espectro dinâmico.
A lâmina II — a substância gelatinosa — é uma camada densamente povoada por diversos tipos de interneurónios locais, uns excitatórios e outros inibitórios. Alguns respondem seletivamente a estímulos nocicetivos; outros respondem também a estímulos inócuos. As lâminas III e IV contêm uma mistura de interneurónios locais e neurónios de projeção supraespinhal, muitos dos quais recebem informação de fibras aferentes A-beta, responsáveis por estímulos cutâneos inócuos, como o deslocamento de pelos ou a pressão ligeira. A lâmina V contém neurónios que respondem a uma grande variedade de estímulos nocivos e que se projetam para o tronco cerebral e para o tálamo; recebem informação direta de fibras A-beta e A-delta e, como as suas dendrites se estendem até à lâmina II, também são inervados por fibras C nocicetivas.
Os neurónios da lâmina V recebem ainda informação de nocicetores localizados em tecidos viscerais. Esta convergência de informação nocicetiva somática e visceral sobre os mesmos neurónios da lâmina V ajuda a explicar o fenómeno conhecido como “dor referida”, em que a dor originada numa lesão visceral é percecionada como tendo origem numa região da superfície corporal. É o caso, por exemplo, de doentes com enfarte do miocárdio, que frequentemente referem dor no braço esquerdo além da dor no tórax.
Este fenómeno ocorre porque um mesmo neurónio da lâmina V recebe informação sensorial de ambas as regiões, pelo que o sinal que envia aos centros superiores não permite distinguir a verdadeira origem do estímulo. Como consequência, o cérebro atribui muitas vezes a dor à pele, possivelmente porque a informação cutânea predomina. Outra explicação anatómica para a dor referida está no facto de os axónios dos neurónios sensitivos nocicetivos se ramificarem na periferia, inervando simultaneamente a pele e órgãos viscerais. Os neurónios da lâmina VI recebem informação de fibras de grande diâmetro que inervam músculos e articulações; são ativados por movimentos articulares inócuos e não participam na transmissão de informação nocicetiva. Já muitos neurónios das lâminas VII e VIII — as regiões intermédia e ventral da espinal medula — respondem, de facto, a estímulos nocivos.
Estes neurónios têm, tipicamente, propriedades de resposta complexas, porque a informação dos nocicetores lhes chega através de múltiplas sinapses intermédias. Os neurónios da lâmina VII respondem muitas vezes a estimulação de qualquer um dos lados do corpo, ao contrário da maioria dos neurónios do corno dorsal, que recebem informação apenas de um lado. Pensa-se que a ativação destes neurónios contribui para a qualidade difusa de muitos quadros de dor.
Os neurónios sensitivos nocicetivos que ativam os neurónios do corno dorsal libertam duas grandes classes de neurotransmissores. O glutamato é o principal neurotransmissor de todos os neurónios sensitivos primários, independentemente da modalidade sensorial. Já os neuropeptídeos são libertados como cotransmissores por muitos nocicetores de axónios não mielinizados, e incluem a substância P, o péptido relacionado com o gene da calcitonina (CGRP), a somatostatina e a galanina. O glutamato é armazenado em pequenas vesículas eletrolúcidas, enquanto os péptidos ficam guardados em grandes vesículas de núcleo denso, nas terminações centrais dos neurónios sensitivos nocicetivos. Este armazenamento separado permite que estas duas classes de neurotransmissores sejam libertadas em condições fisiológicas distintas. Entre os neuropeptídeos expressos por estes neurónios, a substância P — um membro da família das neurocininas — é a mais estudada. É libertada pelas terminações centrais dos aferentes nocicetivos em resposta a lesão tecidular ou após estimulação intensa de nervos periféricos.
A sua interação com recetores de neurocinina nos neurónios do corno dorsal provoca potenciais pós-sinápticos excitatórios lentos, que prolongam a despolarização induzida pelo glutamato. Apesar de as ações fisiológicas do glutamato e dos neuropeptídeos serem diferentes, ambos atuam de forma coordenada para regular a atividade destes neurónios.
Como não existe um mecanismo eficiente de recaptação para os péptidos, os neuropeptídeos libertados pelas terminações sensoriais difundem-se por uma distância maior do que o glutamato, exercendo assim uma influência excitatória sobre muitos neurónios do corno dorsal na vizinhança do local de libertação. Este sistema de sinalização difusa pode ajudar a explicar o carácter pouco localizado de muitos quadros de dor. Além disso, em algumas condições patológicas, os níveis de expressão de neuropeptídeos nos neurónios nocicetivos primários encontram-se aumentados — o que pode contribuir para a maior excitabilidade dos neurónios do corno dorsal observada em alguns estados de dor crónica.
O conhecimento detalhado da interação entre os neuropeptídeos e os seus recetores nos neurónios do corno dorsal tem sugerido novas estratégias para a regulação da dor. A infusão de substância P associada a uma neurotoxina no corno dorsal de animais de experiência provoca a destruição seletiva dos neurónios que expressam recetores de neurocinina. Os animais assim tratados deixam de desenvolver a sensibilização central que normalmente se associa a uma lesão periférica.