Neurónios do Trato Espinotalâmico
Os neurónios de amplo espectro dinâmico do corno dorsal profundo são essenciais para discriminar estímulos dolorosos — e ajudam a explicar o racional neurológico por trás do P-DTR.
Publicado em 04 de março de 2021 por Miguel Vieira
Neurónios do Trato Espinotalâmico no Corno Dorsal Profundo, Neurónios de Amplo Espectro Dinâmico e P-DTR. As principais vias ascendentes da dor (como os tratos espinotalâmico e trigeminotalâmico) têm origem, em parte, nas camadas mais profundas ou ventrais (IV a VI de Rexed) do corno dorsal da espinal medula e do bolbo raquidiano, onde os neurónios recebem informação sináptica de neurónios aferentes primários que inervam nocicetores nos tecidos. Estes neurónios de segunda ordem, no corno dorsal profundo, são sobretudo neurónios de amplo espectro dinâmico (WDR) e, em menor grau, neurónios específicos da nocicepção (NS) — ambos com um papel funcional relevante no processamento de informação exterocetiva e interocetiva associada à dor.
Neurónios de Amplo Espectro Dinâmico (WDR). Os neurónios WDR encontram-se tanto nas camadas superficiais como profundas do corno dorsal. Contudo, os neurónios NS predominam nas camadas superficiais (I e II), enquanto as camadas profundas contêm sobretudo neurónios WDR. Ainda que recebam informação sináptica de aferentes nocicetivos primários A-delta e C, provenientes de tecido cutâneo, visceral, muscular ou outro, são classificados com base na sua resposta a estímulos cutâneos. Os neurónios WDR têm várias características distintivas. Em primeiro lugar, respondem de forma diferenciada a um amplo espectro de intensidades de estímulo, desde muito ligeiras até claramente dolorosas: um estímulo nocivo aplicado na zona mais sensível do seu campo recetivo provoca uma frequência de impulsos mais elevada do que qualquer forma de estimulação inócua. Em segundo lugar, com base em vários testes, sabe-se também que recebem informação sináptica de aferentes primários A-beta, que inervam mecanorrecetores sensíveis na pele.
A demonstração de que existe esta informação A-beta, antes mesmo de qualquer teste com estímulos nocicetivos, mostra que os neurónios WDR da lâmina I não devem ser confundidos com neurónios específicos da nocicepção — isto é, neurónios que respondem sobretudo a calor, pressão e frio, como já foi sugerido por alguns autores. Os neurónios WDR têm uma organização muito característica do seu campo recetivo, com uma zona cutânea central que responde de forma diferenciada a estímulos não nocivos e nocivos, rodeada por uma zona mais alargada que responde sobretudo a estímulos nocicetivos. Esta organização é a base pela qual populações de neurónios WDR conseguem codificar a distinção entre estimulação nociva e não nociva. Múltiplas linhas de evidência mostram que, em comparação com estímulos não nocivos, os estímulos nocivos ativam frequências de impulso mais elevadas e um número maior de neurónios WDR. A quantidade de neurónios ativados é importante para compreender os mecanismos de codificação, já que é a resposta de toda a população — e não de um único neurónio — que traduz a estimulação nociva ou não nociva.
Para além destas características definidoras, várias propriedades dos neurónios WDR são consistentes com o seu papel na dor exterocetiva. Em primeiro lugar, respondem de forma graduada a várias formas de estimulação nociva que traduzem o contacto de objetos externos com a pele; a sua resposta reflete, em grande medida, as próprias características desses objetos. A frequência de impulsos aumenta perante objetos mais afiados ou mais quentes (acima de cerca de 45 ºC), de forma muito próxima do que se observa nas respostas psicofísicas humanas — em ambos os casos, a resposta a estímulos térmicos nocivos (45–51 ºC) segue uma função de potência progressivamente acelerada. Os neurónios WDR têm uma capacidade discriminativa muito elevada, como se demonstrou em estudos com macacos conscientes treinados em tarefas de discriminação: tal como humanos e macacos conseguem detetar variações muito pequenas dentro da amplitude nociva, também os neurónios WDR respondem a variações de temperatura de apenas 0,2 a 0,4 ºC — algo que os neurónios NS não conseguem, e que a sua capacidade discriminativa não permite explicar. É esta capacidade que mostra que os neurónios WDR do corno dorsal profundo fazem parte de uma via ascendente exterocetiva essencial para discriminar pequenas diferenças de temperatura em objetos externos. Esta discriminação fina tem uma função clara: os mamíferos utilizam-na para obter informação sobre as propriedades do meio externo. Um macaco a apanhar bagas num arbusto espinhoso, ou um animal a caçar sobre pedras quentes, faz este tipo de avaliação para se alimentar — pesando a dor causada pelos espinhos ou pelo calor face à necessidade de comer, e decidindo se um determinado objeto ou movimento resultará em mais ou menos dor. Esta elevada capacidade discriminativa do sistema da dor tem também uma implicação importante na sua avaliação clínica: sugere que existem muitos mais níveis discriminativos de dor do que aqueles que escalas de categorias simples ou escalas numéricas conseguem captar.
Uma segunda razão pela qual os neurónios WDR estão implicados na dor exterocetiva é a sua organização somatotópica dentro do corno dorsal, o que permite localizar a origem externa do contacto entre um objeto e o corpo.
Esta organização somatotópica tem sido relativamente pouco reconhecida, e alguns autores chegaram a defender que estes neurónios teriam apenas campos recetivos muito grandes, sem qualquer organização somatotópica. No entanto, os seus campos recetivos variam entre muito pequenos (menos de 2 cm²), médios (por exemplo, parte de um pé ou de uma divisão trigeminal) e grandes (maiores do que um pé ou uma divisão trigeminal) em macacos, sendo ainda mais pequenos em gatos. Além disso, estão organizados de forma somatotópica, no sentido mediolateral, tanto no complexo trigeminal como no corno dorsal espinhal.
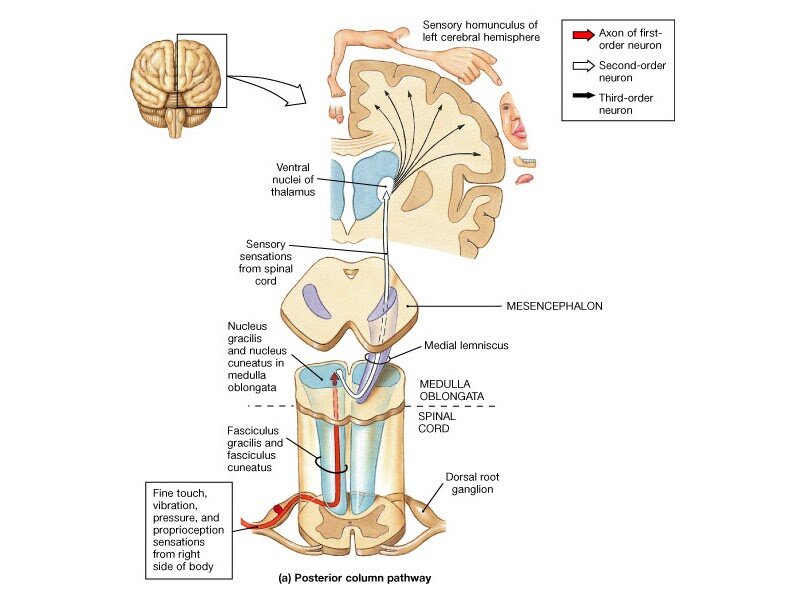
Uma terceira razão para o envolvimento dos neurónios WDR na dor exterocetiva é a sua capacidade de distinguir entre diferentes tipos de estimulação somática externa — nomeadamente, entre estímulos tácteis e nocivos. Os neurónios espinotalâmicos WDR de macacos aumentam de forma consistente a sua frequência de disparo (por exemplo, de menos de 10 Hz para 15–20 Hz) quando um pincel de pelo de camelo é arrastado suavemente pela pele glabra do pé, mantendo essa frequência durante mais de 20 segundos — e, nalguns casos, até 56 segundos depois de terminado o estímulo. Este fenómeno é semelhante às pós-sensações tácteis que os humanos experienciam com o mesmo tipo de estímulo: tanto essas pós-sensações humanas como a resposta prolongada dos neurónios WDR terminam de forma abrupta quando a pele afetada é friccionada. Como os neurónios WDR são a única classe de neurónios espinhais que respondem com este tipo de pós-resposta táctil, é provável que sejam suficientes, por si só, para esta forma de sensação táctil. Ainda assim, os mesmos neurónios WDR respondem sempre com uma frequência de impulsos mais elevada perante estimulação nociva na zona mais sensível do seu campo recetivo. Ou seja, os neurónios WDR respondem de forma diferenciada a várias formas de estimulação somatossensorial, sobretudo quando se considera o comportamento da população como um todo. Codificam a intensidade nocicetiva e a distinção entre estímulos nocivos e não nocivos com uma precisão notável.
O método de Reflexo Osteotendinoso Propriocetivo (P-DTR) foi fundado e desenvolvido pelo Dr. Jose Palomar, e tem sido usado com sucesso na prática clínica há vários anos. O P-DTR é a primeira terapia manual neurológica assente na neurologia, na neurofisiologia, na biomecânica e nos fundamentos da Cinesiologia Aplicada. Trata-se de um sistema neurológico e reflexogénico, capaz de tratar de forma eficaz um vasto espetro de problemas funcionais e resolver disfunções musculoesqueléticas, gastrointestinais, hormonais, químicas e emocionais. Entende-se por disfunção uma alteração fisiológica e reflexa dos órgãos internos, que na maioria dos casos tem um carácter compensatório. O principal objetivo do tratamento com P-DTR é restaurar a atividade reflexa ótima do sistema nervoso perante um estímulo — incluindo a sua resposta motora e glandular —, de forma a que o doente deixe de sentir dor ou desconforto, recupere a amplitude de movimento ótima e se adapte de forma adequada às condições do ambiente externo. Por outras palavras, restaura-se, desta forma, a saúde neurológica.
Os tipos de estímulos aferentes manuais utilizados podem ser produzidos de várias formas — por exemplo, um toque leve e deslizante (para estimular os recetores do tato), alongamento localizado (para estimular os recetores de Golgi), pressão profunda (recetores de Pacini), entre muitos outros. Hoje em dia, o P-DTR trabalha com a maioria dos exterorrecetores, interorrecetores e propriorrecetores que constituem a informação aferente que chega ao sistema nervoso central.
A explicação fisiológica deste método é simples: cada tipo de recetor (por exemplo, Golgi, Pacini, vibração, nocicetores, etc.) é estimulado e, quando o limiar desse recetor é ultrapassado pela quantidade de estímulo, essa informação é convertida em impulsos elétricos. Estes impulsos constituem a informação aferente que chega ao sistema nervoso central, sendo cada tipo de estímulo transmitido pela sua via específica. O sistema nervoso central recebe essa informação, interpreta-a e produz uma resposta motora ou glandular com base na síntese de tudo o que recebeu. A sensação de DOR, por exemplo, é sintetizada diretamente no cérebro e resulta de uma integração complexa de informação proveniente dos sistemas nocicetivo, propriocetivo e exterocetivo. Dito de forma simples, a sensação de dor corresponde à interpretação que o cérebro faz a partir de uma integração complexa de informação de diversas origens — sendo os neurónios de amplo espectro dinâmico e os neurónios não específicos apenas algumas dessas fontes.